Il y a environ 47 000 ans, quelque part entre le LevantLevantRégion du Proche-Orient méditerranéen (Israël, Liban, Syrie, Jordanie), carrefour majeur des premières migrations humaines hors d'Afrique.→ et les steppes d'Eurasie, des groupes d'Homo sapiensHomo sapiensEspèce humaine actuelle, apparue en Afrique il y a environ 300 000 ans, seule lignée humaine survivante après l'extinction de Néandertal et des Dénisoviens.→ fraîchement sortis d'AfriqueAfriqueContinent berceau de l'humanité : les premiers hominines y apparaissent, puis Homo sapiens il y a environ 300 000 ans, avant l'expansion vers le reste du monde.→ croisèrent des populations de NéandertaliensNéandertaliensHumanité fossile d'Eurasie, robuste et adaptée au froid, éteinte vers 40 000 ans avant le présent.→ installées là depuis des centaines de milliers d'années. De ces rencontres naquirent des enfants métis, et une partie de leur patrimoine génétique a traversé les millénaires jusqu'à nous. Aujourd'hui, toute personne dont les ancêtres ne sont pas exclusivement africains porte en moyenne 1 à 2 % d'ADNADNMolécule porteuse de l'information génétique, utilisée pour reconstruire les liens de parenté entre espèces.→ hérité des Néandertaliens. Mais cet héritage n'est pas un saupoudrage uniforme. Quand les généticiens cartographient précisément où se logent ces fragments anciens, ils découvrent un paysage accidenté, avec des zones richement peuplées de séquences archaïques et d'autres, au contraire, presque entièrement balayées. Le chromosome X figure parmi les plus pauvres de tous.
Cette découverte ne relève pas de la curiosité anecdotique. La façon dont l'introgressionIntrogressionTransfert durable de fragments d'ADN d'une population ou d'une espèce vers une autre à la suite de métissages répétés, détectable dans les génomes longtemps après.→ néandertalienne se distribue dans notre génome raconte une histoire biologique précise, celle d'une hybridationHybridationCroisement entre deux espèces ou lignées distinctes, comme Homo sapiens et Néandertal, laissant une trace dans le génome.→ partiellement réussie, mais aussi partiellement contrariée par les lois de la génétique des populations. En lisant la carte des survivances et des absences, les chercheurs reconstituent non seulement la quantité du métissageMétissageCroisement génétique entre populations ou espèces humaines ; entre Néandertal et Homo sapiens, il a laissé 1 à 2 % d'ADN néandertalien chez les non-Africains.→, mais sa nature intime, ses contraintes et même, selon des travaux récents, le sexe des partenaires qui s'accouplaient le plus souvent. L'ADN ancienADN ancienMatériel génétique conservé dans des vestiges anciens, souvent dégradé, séquencé grâce à des techniques de pointe.→, extrait d'ossements vieux de dizaines de milliers d'années, sert ici de pierre de touche pour confirmer ou corriger ces reconstitutions.
Le trou du chromosome X
En 2014, l'équipe de Sriram Sankararaman, au laboratoire de David Reich à Harvard, publia dans Nature une cartographie fine de l'ascendance néandertalienne chez plus d'un millier d'individus actuels. Le résultat le plus frappant tenait en une anomalie statistique massive. Sur les autosomes, les 22 paires de chromosomes non sexuels, l'ADN néandertalien se retrouvait à des niveaux comparables d'un chromosome à l'autre. Mais sur le chromosome XChromosome XL'un des deux chromosomes sexuels, présent en deux exemplaires chez la femme et en un seul chez l'homme.→, la proportion s'effondrait, environ cinq fois plus faible que la moyenne autosomique. Comme si une force avait patiemment expulsé les segments archaïques de ce chromosome particulier.
Le même travail révéla un second signal, tout aussi parlant. Les régions du génome contenant des gènes fortement exprimés dans les testicules étaient, elles aussi, significativement appauvries en ADN néandertalien.1 Deux indices convergents, donc, qui pointaient tous deux vers la reproduction masculine. Le chromosome X occupe en effet une place singulière dans la biologie de la fertilité, car il concentre, chez de nombreuses espèces, des gènes impliqués dans la production des spermatozoïdes et dans la compatibilité reproductive entre lignées divergentes. Que ces régions soient précisément celles d'où l'héritage néandertalien a été chassé n'avait rien d'un hasard aux yeux des auteurs.
La conclusion qu'ils en tirèrent était prudente mais lourde de sens. Certaines versions néandertaliennes de ces gènes, replacées dans un fond génétique moderne, auraient réduit la fertilité des hommes qui les portaient. Au fil des générations, ces porteurs laissant moins de descendants, les variantes concernées se sont raréfiées, puis effacées. Le génome des humains actuels garderait ainsi l'empreinte, en négatif, d'une incompatibilité biologique partielle entre les deux lignées humaines.
La règle de Haldane et la stérilité des hybrides mâles
Pour comprendre pourquoi le chromosome X et les gènes testiculaires se retrouvent au premier rang des victimes, il faut convoquer un principe formulé dès 1922 par le généticien britannique J. B. S. Haldane. La règle de HaldaneRègle de HaldanePrincipe selon lequel, dans un croisement entre lignées, le sexe hétérogamétique (mâle chez les mammifères) est le premier touché par la stérilité ou la non-viabilité.→ stipule que, lorsqu'un croisement entre deux espèces ou deux lignées produit une descendance dont un sexe est stérile ou non viable, c'est presque toujours le sexe hétérogamétique qui est touché, c'est-à-dire celui qui porte deux chromosomes sexuels différents. Chez les mammifères, dont l'humain, ce sexe est le mâle, muni d'un X et d'un Y là où la femelle possède deux X.
Cette règle, vérifiée chez une multitude d'espèces animales, de la drosophile aux souris, s'explique en partie par le comportement particulier du chromosome X. Chez le mâle, l'unique copie de l'X n'est pas doublée par une seconde version capable de masquer ses défauts, de sorte que toute variante néandertalienne mal accordée au reste du génome s'exprime pleinement, sans filet. Les gènes de fertilité masculine, souvent logés sur l'X et dans les régions testiculaires, deviennent alors les points de friction privilégiés entre deux génomes qui avaient divergé pendant quelque 500 000 ans avant de se recroiser. Les premiers hybrides mâles auraient souffert d'une fertilité amoindrie, phénomène que les biologistes nomment sous/infertilité hybride.
Le mécanisme qui a ensuite nettoyé le génome porte un nom, la sélection purificatriceSélection purificatriceForme de sélection naturelle qui élimine progressivement les variantes génétiques nuisibles au fil des générations.→. Il ne s'agit pas d'une sélection qui favorise de nouveaux traits avantageux, mais d'un tri qui élimine progressivement les variantes nuisibles. À chaque génération, les segments néandertaliens légèrement délétères, en particulier ceux liés à la reproduction masculine, réduisaient la descendance de leurs porteurs. Multipliée sur des centaines de générations, cette pression a creusé le déficit observé sur le chromosome X et près des gènes des testicules. Il faut noter que toutes les explications ne convergent pas vers la seule infertilité hybride, certains chercheurs invoquant aussi la petite taille de la population néandertalienne, qui avait accumulé un fardeau de mutations faiblement délétères que la sélection a ensuite épuré chez les humains modernes.
Déserts génomiques et le poids de la sélection
La même année 2014, une seconde équipe conduite par Benjamin Vernot et Joshua Akey, alors à l'université de Washington, aboutissait à des conclusions complémentaires par une méthode différente. Plutôt que de comparer les génomes modernes à une séquence néandertalienne de référence, ces chercheurs ont reconstitué les fragments archaïques directement à partir de centaines de génomes humains actuels, européens et est-asiatiques, puis ont reconstruit par assemblage l'équivalent d'environ un cinquième du génome néandertalien dispersé dans nos populations.2
Leur carte confirma l'existence de vastes régions chromosomiques presque totalement dépourvues d'ADN néandertalien, que les généticiens ont surnommées les déserts d'introgressionDésert d'introgressionVaste région chromosomique presque totalement dépourvue d'ADN archaïqueArchaïqueSe dit d'une population ou d'une forme humaine ancienne et aujourd'hui disparue (Néandertal, Denisova, lignées fantômes), par opposition aux humains anatomiquement modernes.→, vidée par la sélection.→. Ces déserts ne sont pas répartis au hasard. Ils coïncident souvent avec des zones riches en gènes essentiels, et le plus étendu d'entre eux couvre une large portion du chromosome X. Dans ces secteurs, la sélection a été si efficace qu'elle n'a laissé subsister aucun héritage archaïque mesurable. À l'inverse, d'autres régions ont conservé des variantes néandertaliennes, parfois parce qu'elles conféraient un avantage, par exemple des gènes liés à la pigmentation de la peau, à la kératine ou à la réponse immunitaire, mieux adaptés aux environnements eurasiens que les Néandertaliens habitaient depuis longtemps.
Le travail de Vernot et Akey suggérait aussi que l'hybridation avait eu un coût de fitness, et qu'elle s'était peut-être produite à plusieurs reprises, avant et après la séparation des ancêtres des Européens et des Est-Asiatiques. L'image qui se dégageait de ces deux études pionnières était celle d'un métissage réel mais fragile, dont le génome moderne a conservé surtout ce qui n'entravait pas la reproduction, et parfois ce qui l'aidait. Les déserts génomiques sont, en ce sens, les cicatrices d'une sélection impitoyable exercée sur une descendance hybride pendant des dizaines de milliers d'années.
Qui s'accouplait avec qui, et quand
Au-delà du combien et du pourquoi, la carte génétique permet d'aborder une question presque intime, celle du sens des unions. Une étude parue en 2026 dans Science, menée dans le laboratoire de Sarah Tishkoff à l'université de Pennsylvanie, a abordé le problème en examinant non plus l'ADN néandertalien chez les humains modernes, mais l'inverse, la part d'ascendance humaine moderne logée dans les génomes néandertaliens anciens. Les auteurs y ont relevé un excès relatif d'environ 62 % d'ascendance humaine moderne sur le chromosome X des Néandertaliens.3
Ce chiffre ouvre une fenêtre sur la démographie des accouplements. Parce qu'une mère transmet toujours un chromosome X à ses enfants, tandis qu'un père ne transmet le sien qu'à ses filles, un déséquilibre d'ascendance sur l'X trahit un biais dans le sexe des partenaires. Le signal relevé par l'équipe de Tishkoff est cohérent avec des unions majoritairement formées d'hommes néandertaliens et de femmes Homo sapiens. Les auteurs considèrent qu'une préférence d'accouplement constitue l'explication la plus simple, même si des scénarios de migrationsMigrationsDéplacements de populations sur de longues distances ; moteur majeur de l'histoire humaine (sortie d'Afrique, peuplement des continents, diffusions néolithiques et steppiques).→ biaisées selon le sexe pourraient, en théorie, produire des motifs comparables. Ce constat est d'autant plus notable qu'il va à rebours de nombreux cas documentés de contact entre populations humaines, où ce sont souvent les femmes du groupe en expansion qui s'unissaient aux hommes du groupe résident.
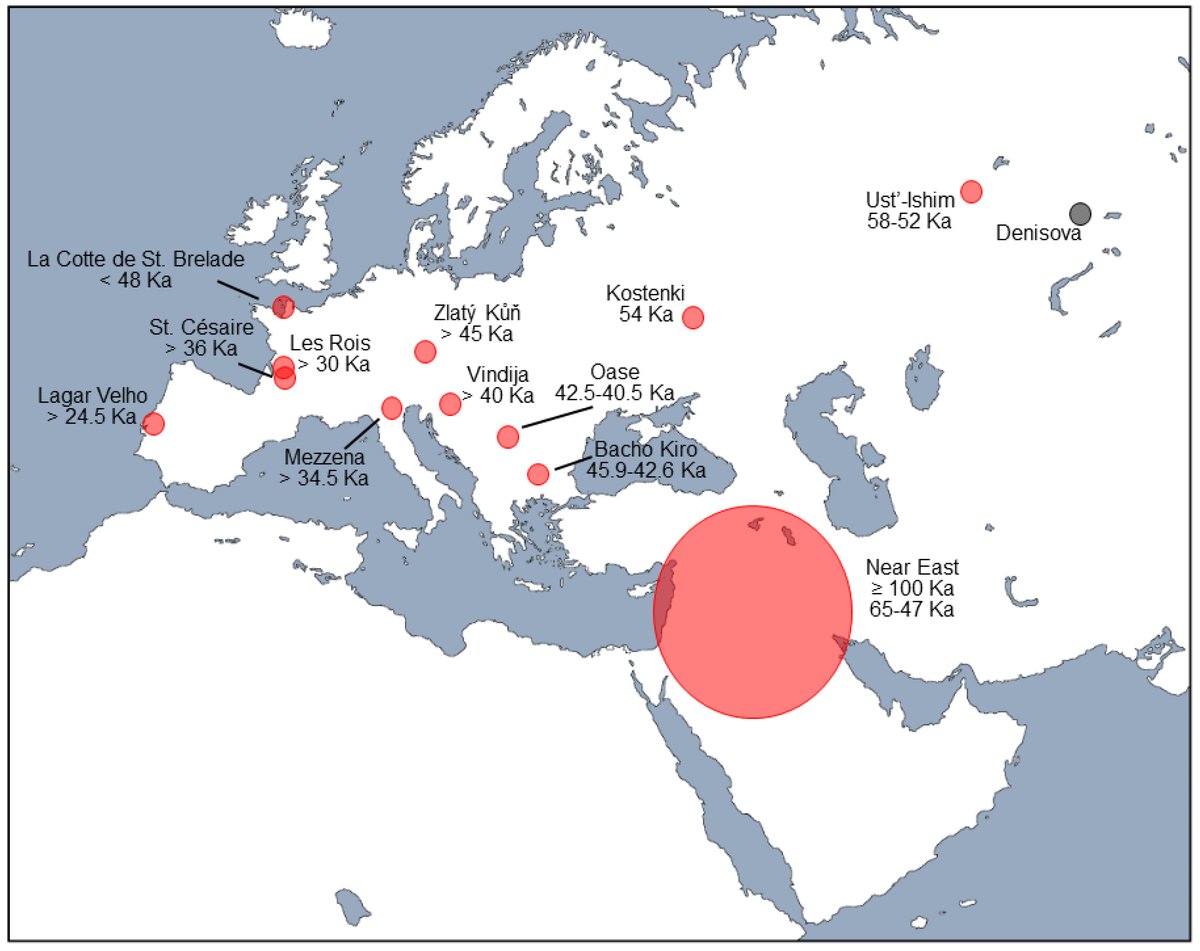
Reste la question de la date. Longtemps, le brassage principal fut estimé à une fourchette large. Deux études publiées en décembre 2024 l'ont considérablement resserrée. Dans Science, l'équipe de Leonardo Iasi, de l'Institut Max Planck d'anthropologie évolutive à Leipzig, a daté le principal épisode de flux génétique autour de 47 000 ans, en estimant qu'il s'était étalé sur une période d'environ 7 000 ans plutôt qu'en un instant unique.4 La même semaine, dans Nature, l'équipe de Arev Sümer, à laquelle Iasi collaborait, analysait les plus anciens génomes humains modernes connus, provenant des sites de Ranis en Allemagne et de Zlatý kůň en Tchéquie. Ces génomes portaient des segments néandertaliens issus d'un unique événement d'admixture partagé par tous les non-Africains, daté entre 45 000 et 49 000 ans.5
Les deux travaux convergent vers un scénario commun, celui d'un flux génétique majeur et largement unique, ancestral à l'ensemble des populations non africaines, calé sur une fenêtre de quelques milliers d'années autour de 47 000 ans avant le présent.6 Cette datation coïncide remarquablement avec les traces archéologiques d'une coexistence entre Homo sapiens et Néandertaliens en Europe, peu avant la disparition de ces derniers. Elle impose aussi une limite temporelle, car les individus de Ranis, vieux d'environ 45 000 ans, appartenaient à une lignée qui n'a pas laissé de descendance aujourd'hui, preuve que l'Europe a connu plusieurs vagues de peuplement, dont certaines sans lendemain.
Ce resserrement de la datation a des conséquences qui dépassent la seule chronologie. Si l'essentiel du métissage s'est concentré sur une fenêtre de quelques millénaires, cela signifie que l'horloge de la sélection a commencé à tourner presque simultanément pour tous les non-Africains, et que les déserts génomiques observés chez les Européens, les Asiatiques et les Océaniens dérivent largement du même stock initial d'ADN néandertalien, trié ensuite dans des contextes régionaux. Les segments archaïques les plus longs, encore peu morcelés par la recombinaison, confirment d'ailleurs cette ancienneté, car plus un fragment introgressé est court, plus le nombre de générations écoulées depuis son entrée dans le génome est grand. En mesurant la longueur de ces blocs, les généticiens peuvent ainsi lire le temps lui-même, inscrit dans la structure physique de nos chromosomes.
Une carte qui raconte une histoire
De la cartographie fine du génome émerge donc un récit cohérent. Les ancêtres des humains non africains se sont bel et bien mêlés aux Néandertaliens, lors d'un épisode principal daté autour de 47 000 ans, en des unions où les hommes néandertaliens semblent avoir plus souvent engendré avec des femmes Homo sapiens. Mais la part néandertalienne la plus intimement liée à la fertilité masculine, concentrée sur le chromosome X et dans les gènes testiculaires, a été progressivement éliminée par la sélection purificatrice, conformément à la règle de Haldane. Les déserts d'introgression sont les traces de ce nettoyage, les régions adaptatives conservées en sont le pendant positif.
Chacun de nous, pour peu que ses racines plongent hors d'Afrique, porte ainsi en lui une mosaïque de fragments archaïques, triée par des dizaines de milliers d'années d'évolution. Le chromosome X presque vierge et les déserts génomiques ne sont pas des vides anodins, mais la mémoire négative d'une rencontre fondatrice entre deux humanités.
Il faut se garder d'une lecture trop simple de ces données. Les biais statistiques, la qualité variable de l'ADN ancien et la difficulté de distinguer la sélection d'autres processus démographiques imposent la prudence, et le débat reste vif entre les tenants de l'infertilité hybride et ceux du fardeau mutationnel néandertalien. Les deux mécanismes ne s'excluent d'ailleurs pas, et pourraient avoir agi de concert. Ce qui est désormais solide, c'est le motif lui-même, cette signature en creux sur le chromosome X et dans les gènes de la reproduction, reproductible d'une étude à l'autre. L'ADN ancienADN ancienMatériel génétique conservé dans des vestiges anciens, souvent dégradé, séquencé grâce à des techniques de pointe.→ continue, année après année, de rendre cette histoire plus nette, et les prochains génomes exhumés affineront sans doute encore le portrait de ce métissage qui nous a faits ce que nous sommes.
Article bien calibré pour un public non-spécialiste. La complexité n'est pas escamotée.
Ce qui me plaît c'est que vous citez vos sources. Je peux vérifier par moi-même.
J'ai visité ce type de site lors d'une excursion. Votre article m'aide à mieux comprendre ce que j'ai vu.